
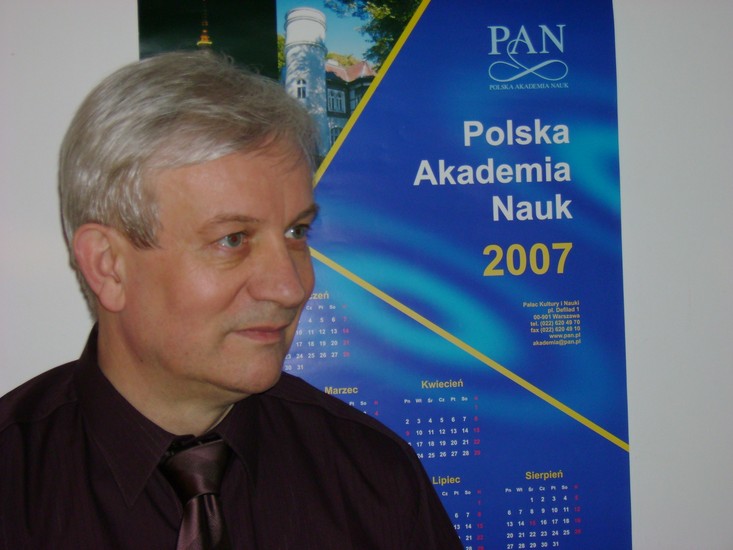
Prof. dr hab. Włodzimierz Krzyżosiak, chemik, jest kierownikiem Pracowni Genetyki Nowotworów w Instytucie Chemii Bioorganicznej PAN w Poznaniu. Jego wcześniejsze prace dotyczyły chemicznej modyfikacji kwasów nukleinowych i badań strukturalnych RNA. Zajmował się ulepszaniem metod wykrywania mutacji w DNA i badał geny predyspozycji do nowotworów, głównie raka piersi, oraz geny związane z dziedzicznymi chorobami neurologicznymi. Laureat pierwszej edycji Subsydiów Profesorskich FNP w dziedzinie nauk biologicznych i medycznych. Od 2004 członek korespondent Polskiej Akademii Nauk.
Obiektem zainteresowań Pana i Pańskiego zespołu w Instytucie Chemii Bioorganicznej PAN jest kilka chorób, których wspólną cechą genetyczną jest ekspansja powtarzającego się tandemowo krótkiego trójnukleotydowego motywu sekwencji. O jakie choroby chodzi i jakiej części populacji one dotyczą?
– Jest to grupa już prawie dwudziestu chorób o bardzo nietypowym podłożu genetycznym, jakim jest wydłużanie sekwencji powtarzającej się ponad granice normy. Taką mutację wykryto po raz pierwszy w 1991 roku jako przyczynę dwóch chorób: zespołu łamliwego chromosomu X oraz rdzeniowo−opuszkowego zaniku mięśni typu Kennedy’ego. W kolejnych latach odkryto podobne mutacje jako przyczynę dystrofii miotonicznej, choroby Huntingtona oraz szeregu ataksji rdzeniowo−móżdżkowych. Są to choroby neurologiczne, głównie neurodegeneracyjne i neuromięśniowe. Najbardziej znaną z nich jest choroba Huntingtona, zwana wcześniej pląsawicą, powodowana przez nadmierny wzrost liczby powtórzeń CAG w genie HD znajdującym się na chromosomie 4. Charakteryzuje się zaburzeniami ruchowymi i upośledzeniem funkcji intelektualnych, ponieważ zwyrodnieniu ulegają neurony w tych obszarach mózgu, które odpowiadają za koordynację ruchów pamięci i życia emocjonalnego. Typowa forma tej choroby diagnozowana jest zwykle między 35. a 40. rokiem życia i chorzy umierają po 15−20 latach jej trwania. Choroby z tej grupy występują w populacji nie częściej niż u jednej osoby na kilka tysięcy. Zainteresowały jednak badaczy, szczególnie ze względu na charakter mutacji i mechanizm jej powstawania oraz mechanizm patogenezy. Przyczynowa a nie objawowa terapia tych chorób jest także dużym wyzwaniem dla medycyny. Ponieważ nikt z mojego zespołu nie jest lekarzem, interesujemy się głównie molekularnymi aspektami tych chorób, badając głównie uszkodzone geny i ich produkty oraz komórki pochodzące od pacjentów, wykorzystując w tym celu nowoczesną biologię molekularną i wiedzę o genomie.
Naukowcy posiedli już sporą wiedzę o genomie ludzkim. Jaka część naszego genomu składa się z powtarzanych sekwencji?
– Ponad połowę genomu stanowią różnego typu sekwencje powtarzające się. Jednak tandemowe powtórzenia krótkich 1−6−nukleotydowych motywów to około 3 procent genomu, a same powtórzenia trójnukleotydowe to około 0,1 procent. Występują one jednak częściej niż inne typy powtórzeń w genach, w ich częściach ulegających translacji do sekwencji białkowych. Gdy liczba powtórzeń określonego trypletu jest dostatecznie duża, ponad 10, to taki ciąg wykazuje polimorfizm, czyli zróżnicowanie długości. Wiemy o tym dobrze, bo sami zbadaliśmy takie ciągi w ponad 100 genach u 100 osób z populacji polskiej. Mamy różne długości takich ciągów w setkach naszych genów, a różnimy się od siebie niewiele i pozostajemy zdrowi.
Skąd się te sekwencje wzięły, jakie pełnią funkcje w genomie i czym skutkują błędy w procesie ich powielania?
– Jeżeli nie będziemy sięgać do samych początków oraz wczesnych etapów ewolucji sekwencji powtarzających się, a skupimy się na ich obecnej postaci, to zobaczymy, że u człowieka występują najdłuższe ciągi takich sekwencji. Są one widocznie korzystne z perspektywy ewolucji. Im dłuższy ciąg powtórzeń, tym większy polimorfizm jego długości i co za tym idzie – możliwość regulowania funkcji produktu takiego genu. Niczego nie ma jednak w przyrodzie za darmo. Większe staje się również niebezpieczeństwo, że taki ciąg ulegnie patologicznej ekspansji podczas replikacji materiału genetycznego. Ryzyko mutacji prowadzącej do choroby jest zatem ceną, jaką trzeba zapłacić za większe możliwości modulowania funkcji genów. Genów mamy mniej więcej tyle, co inne ssaki, lecz nasze geny zapewniają większe mikrozróżnicowanie funkcji.
Jaka wiedza umożliwiła wysnucie przypuszczenia, że zmutowany transkrypt może aktywować proces patogenezy?
– W przypadku kilku chorób ciągi powtórzeń ulegające ekspansjom znaleziono w takich regionach genów, które nie ulegają translacji, zatem czynnikiem wywołującym patogenezę nie mogło być wadliwie funkcjonujące, zmutowane białko, gdyż pozostawało ono normalne. Tak jest w przypadku dystrofii miotonicznych typu 1 i 2, a także w przypadku zespołu drżenia i ataksji związanego z łamliwym chromosomem X. Cechą wspólną dystrofii miotonicznych typu 1 i 2, charakteryzujących się bardzo podobnymi objawami klinicznymi, jest występowanie określonej przez nas struktury „spinki do włosów”, tworzonej przez patologicznie wydłużone ciągi powtórzeń. Inni badacze dowiedli następnie, że struktury te faktycznie inicjują proces patogenezy. Postawiliśmy wtedy hipotezę, że struktura RNA tego samego typu może współuczestniczyć w patogenezie innych chorób tej grupy, również tych, w których genach ciągi powtórzeń ulegają translacji do zmutowanych białek. Tezę tę wsparliśmy dowiedzionym przez nas podobieństwem struktur RNA, tworzonych przez powtórzenia w transkryptach większości genów związanych z tą grupą chorób. To jednak nie było przekonujące. Włączyliśmy zatem do naszych badań metody bioinformatyki, genomiki strukturalnej i funkcjonalnej, aby poznać lepiej nie tylko komórkowych „oprawców”, za jakich uważamy zmutowane transkrypty, ale również ich potencjalne „ofiary”, czyli inne RNA zawierające takie same, lecz krótsze sekwencje powtarzające się, które w komórkach pacjentów mają problem z pełnieniem swej normalnej funkcji. Najpierw identyfikowaliśmy takie transkrypty, później określaliśmy w nich zakres długości sekwencji powtarzającej się oraz poziom ich ekspresji w komórkach. Badaliśmy zatem komórkowy „krajobraz” transkryptów zawierających powtórzone sekwencje, czyli „scenerię”, w której może się rozwijać proces patogenezy na poziomie RNA. Badania te trwają u nas, a podobne prowadzone są w innych laboratoriach i czas pokaże, jak duża jest rola RNA w patogenezie całej tej grupy chorób.
Czy zainteresowania Pana i Pańskiego zespołu dotyczą jedynie procesów patogenezy indukowanej przez RNA?
– Nie, pracujemy również nad ulepszaniem metod diagnostyki molekularnej oraz terapii chorób wywoływanych mutacjami sekwencji powtórzonych. Ta ostatnia aktywność w ostatnich latach szczególnie nas absorbuje, pasjonuje i zobowiązuje zarazem, gdyż pracujemy w ramach europejskiego konsorcjum realizującego zintegrowany projekt badawczy RNA Interference Technology as Human Therapeutic Tool (RIGHT). Naszym zadaniem jest lepsze poznanie podstawowych mechanizmów procesu interferencji RNA i opracowanie na modelach komórkowych (in vitro) oraz na modelu mysim (in vivo) założeń skutecznej, przyczynowej terapii interesującej nas grupy chorób neurologicznych. Taka jest zwykle kolejność prac zmierzających do opracowania nowych leków, a o reagentach, wykorzystujących w swym działaniu zjawisko interferencji RNA, mówi się powszechnie nie inaczej, jak tylko o lekach nowej generacji.
Czy Pański zespół odniósł już jakieś sukcesy w tych badaniach?
– Realizacja projektu RIGHT jest już na półmetku, więc czas najwyższy na pierwsze znaczące wyniki. Jako jedyny reprezentant Europy Środkowej i Wschodniej w tym projekcie nie wypadamy źle. Ostatnio opublikowaliśmy pracę w „Molecular Cell”, czasopiśmie biomedycznym z „górnej półki”. Pokazujemy w niej, że struktury typu spinki – występujące w transkryptach zmutowanych genów powodujących dystrofię miotoniczną typu 1, chorobę Huntingtona i jedną z ataksji rdzeniowo−móżdżkowych – są fragmentowane przez enzym Dicer, a te fragmenty mogą wchodzić na szlak interferencji RNA i degradować transkrypty zawierające długie sekwencje komplementarne. Z naukowego punktu widzenia są to całkowicie nowe przykłady aktywności komórkowej maszynerii interferencji RNA, pokazujące w jak ciekawy sposób w zjawisku interferencji RNA mogą uczestniczyć sekwencje powtórzone.
Jakie mogą być praktyczne aplikacje ostatnich odkryć Pańskiego zespołu w medycynie?
– Zaobserwowany przez nas proces zachodzący w komórkach wykorzystaliśmy do zademonstrowania, iż może on stanowić podstawę terapii tych chorób. Pokazaliśmy, że syntetyczne RNA, podobne do powstającego w komórkach osób chorych, podawane do tych komórek z zewnątrz na drodze transfekcji, powoduje wysoce specyficzną degradację zmutowanych transkryptów, podczas gdy transkrypty normalne są albo odporne, albo znacznie mniej podatne na ich działanie. Wyniki te uświadomiły nam, że to, co wcześniej wydawało się niemożliwe, jest jednak możliwe. Stwarzają one bardzo dobrą podstawę do opracowania metod terapii tej grupy chorób, polegających na skutecznej i specyficznej eliminacji zmutowanych transkryptów w obecności ich normalnych wariantów, które są komórkom potrzebne. Oczywiście, cały szereg problemów pozostaje jeszcze do rozwiązania na modelach komórkowych i zwierzęcych, zanim rozważana będzie sprawa przystąpienia do badań klinicznych.